Il Nobel 2026 per la fisiologia o medicina a Karl Deisseroth, Peter Hegemann e Georg Nagel, «per le scoperte sui canali ionici attivati dalla luce e sull’optogenetica», viene raccontato come premio alle neuroscienze. In effetti l’optogenetica ha cambiato il modo di studiare il cervello. Però la sua lezione più intrigante riguarda forse altro. Il pezzo decisivo dello strumento premiato non è stato progettato da alcun ricercatore: è stato costruito dalla selezione naturale in un’alga unicellulare. Funziona in un neurone di mammifero per la stessa ragione per cui funziona buona parte della biotecnologia, cioè perché la vita sulla Terra discende da un antenato comune e conserva un nucleo profondo di macchinari molecolari.
Dall’alga al neurone
La storia comincia lontano dal cervello, con una domanda di fisiologia cellulare: come fa Chlamydomonas reinhardtii, un’alga verde con due flagelli e una macchia oculare arancione, a nuotare verso la luce? Che il fotorecettore fosse una rodopsina lo avevano scoperto nel 1984 Kenneth Foster e collaboratori, restituendo la fototassi a mutanti ciechi con l’aggiunta di retinale. Nel 1991 Hegemann e Hartmann Harz misurarono le correnti elettriche prodotte dall’illuminazione e videro che erano troppo rapide per una cascata di secondi messaggeri, come quella della visione dei vertebrati: sensore e canale potevano coincidere nella stessa proteina. La conferma venne dalla genomica.
Nel laboratorio di Hegemann, Suneel Kateriya individuò nelle banche di sequenze dell’alga i geni di grandi rodopsine di tipo microbico. Nagel, insieme a Ernst Bamberg, li espresse negli oociti di rana Xenopus laevis e in cellule di mammifero. Fra il 2002 e il 2003 furono caratterizzate le canalrodopsine, proteine di membrana che sono esse stesse canali ionici aperti direttamente dalla luce. Il laboratorio di John Spudich, a Houston, era giunto in parallelo alle stesse sequenze. La canalrodopsina-2 lascia passare cationi e depolarizza la cellula che la esprime.
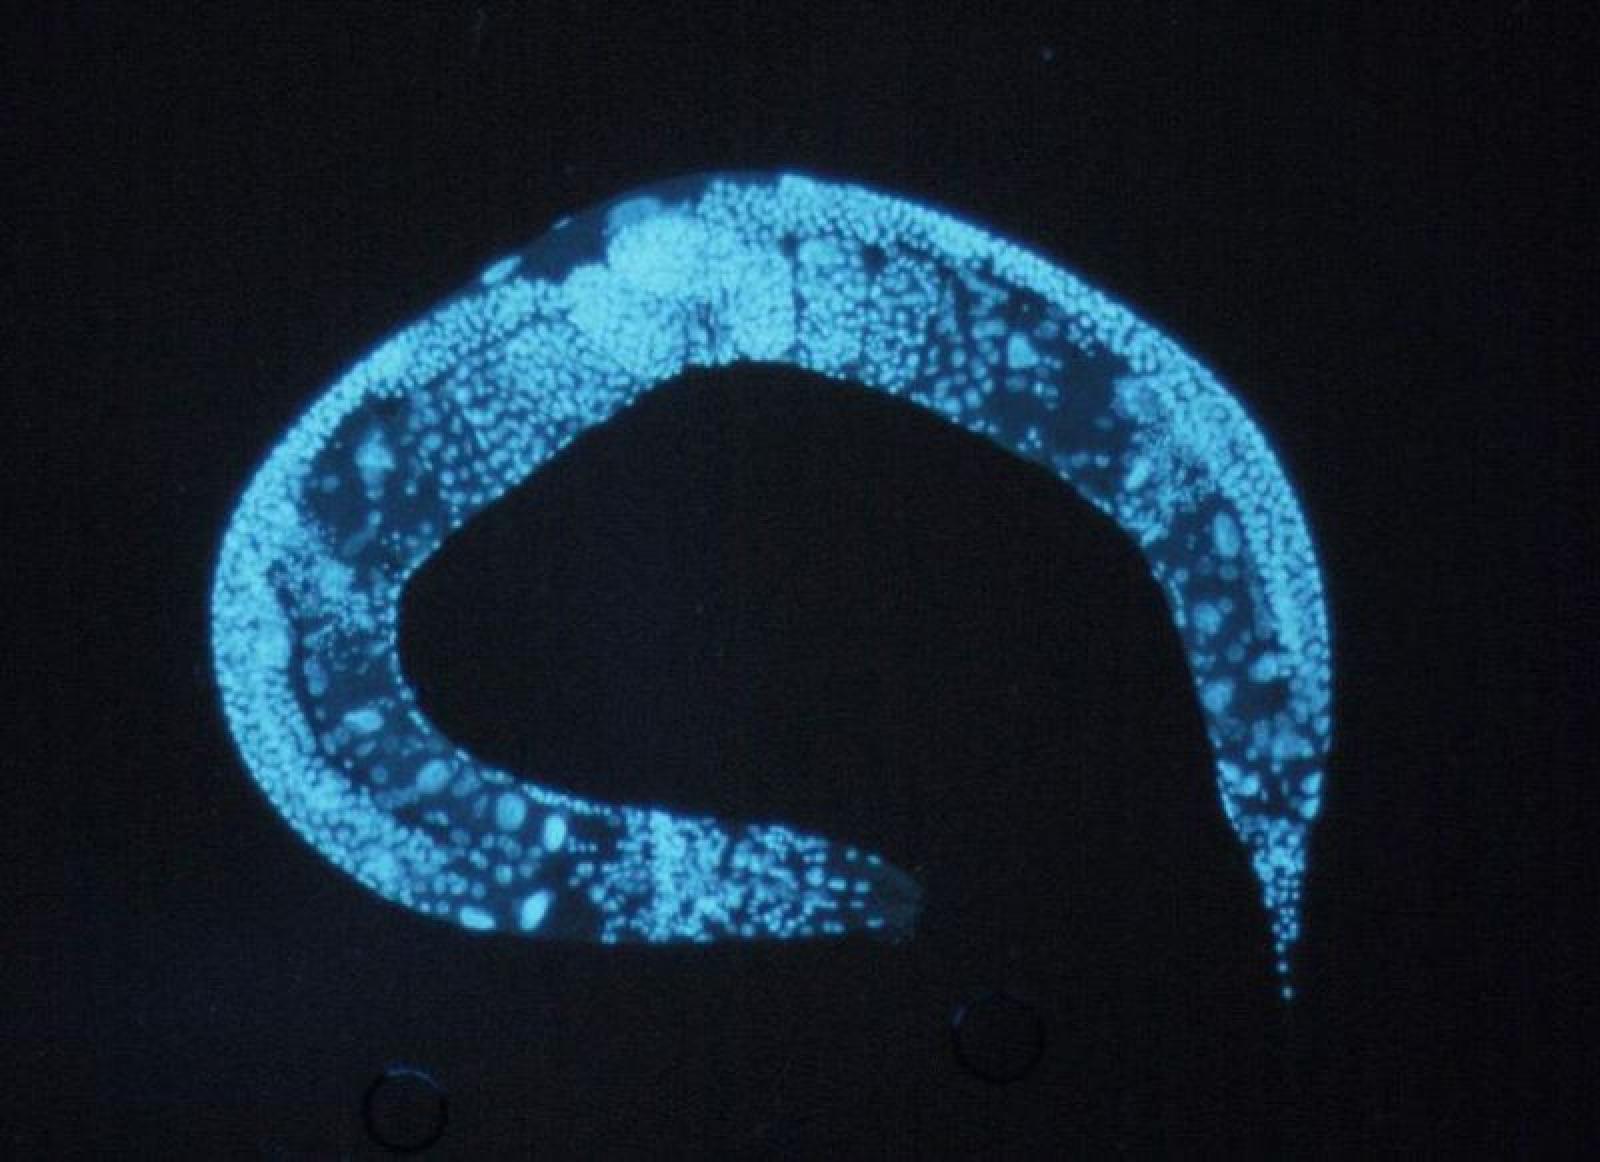
Nel 2005 Edward Boyden, Feng Zhang e Deisseroth, in collaborazione con Nagel e Bamberg, introdussero il gene in neuroni di ratto in coltura e osservarono che impulsi di luce blu evocavano potenziali d’azione con precisione dell’ordine del millisecondo. Nel giro di pochi mesi altri gruppi, quello di Stefan Herlitze, lo stesso Nagel nel nematode Caenorhabditis elegans, Tomohiro Ishizuka e colleghi in Giappone, ottennero risultati analoghi.
Il dettaglio che rese tutto semplice è quello che dice anche di più. La canalrodopsina ha bisogno di retinale, il derivato della vitamina A che assorbe il fotone, e nei neuroni dei mammiferi quello già presente bastava: nessun gene aggiuntivo, nessuna sostanza da somministrare. Una proteina di un’alga veniva trascritta, tradotta, ripiegata e inserita nella membrana di un neurone di roditore. Lì faceva il suo mestiere.
Questa interoperabilità non era un colpo di fortuna tecnico. Appunto la discendenza comune di tutti i viventi ha conservato per più di un miliardo di anni macchinari della sintesi proteica, della membrana e del metabolismo dei retinoidi in lignaggi separati da un’enorme distanza filogenetica. L’ingegnere genetico ha smontato un pezzo da un organismo per rimontarlo in un altro, perché i due erano costruiti, alla radice, con lo stesso materiale bricolagistico.
Nel 2006 il gruppo di Deisseroth proponeva il termine optogenetica e l’anno dopo fibre ottiche impiantate portavano la luce ai circuiti di topi liberi di muoversi. Per spegnere i neuroni si ricorse a un’altra opsina microbica, l’alorodopsina, una pompa per il cloruro dell’archeo Natronomonas pharaonis. Si tratta di un parente della batteriorodopsina che Dieter Oesterhelt e Walther Stoeckenius avevano descritto nel 1971 studiando microrganismi delle saline, senza alcuna idea di quel che sarebbe venuto fuori. La biodiversità microbica divenne un catalogo da cui pescare opsine con colori, cinetiche e funzioni diverse, e la mutagenesi mirata ne produsse varianti su misura.
Un archivio di soluzioni evolute
L’optogenetica, come logica strumentale, non è una stranezza nella storia della scienza. La proteina fluorescente verde (GFP) viene da una medusa, Aequorea victoria. La reazione a catena della polimerasi è diventata pratica grazie a un enzima resistente al calore isolato da Thermus aquaticus, un batterio delle sorgenti termali di Yellowstone. CRISPR è un sistema immunitario adattativo con cui i batteri si difendono dai virus.
Il Nobel per la chimica del 2018 a Frances Arnold, George Smith e Gregory Winter vede l’evoluzione non più soltanto saccheggiata, ma usata come metodo, con cicli di variazione e selezione in provetta per ottenere enzimi e anticorpi che nessuno avrebbe saputo disegnare. In tutti questi casi la biologia contemporanea attinge a un archivio di soluzioni accumulato in miliardi di anni di prove ed errori, e lo fa con un’efficacia che una progettazione artificiale di simili soluzioni è ancora lontana dall’eguagliare.
Se ne ricava un argomento a favore della ricerca di base. In una forma che deve essere pertinente. Noi ci concentriamo sull’alga che ha dato la canalrodopsina e sulla medusa che ha dato la GFP, ma sono migliaia gli organismi studiati per curiosità senza che alcuna ricaduta strumentale ne sia derivata.
Raccontata come una serie di aneddoti fortunati, la tesi presterebbe il fianco all’obiezione della selezione dei casi riusciti. Nessuno poteva prevedere che la fototassi di un’alga avrebbe fornito il controllo ottico dei neuroni, né che l’immunità dei batteri avrebbe fornito l’editing del genoma: lo spazio delle soluzioni evolute è troppo vasto e troppo imprevedibile per essere esplorato su commissione.
Finanziare la ricerca mossa dalla curiosità significa campionarlo in modo ampio, accettando che la gran parte dei campioni non produca strumenti. Ed è l’unica strategia razionale quando non si sa dove cercare.
Strumenti che cambiano le domande
C’è anche un interessante risvolto epistemologico, che riemerge. Il filosofo canadese Ian Hacking, in Representing and Intervening (1983), proponeva di spostare l’attenzione dal rappresentare all’intervenire, e sosteneva che le entità di cui ci serviamo come strumenti per agire su altro, come gli elettroni che si “spruzzano” su un bersaglio, hanno titoli particolari per essere considerate reali.
La canalrodopsina è un caso esemplare: una proteina di cui all’inizio si capiva poco la struttura è diventata in pochi anni un attrezzo di laboratorio usato in migliaia di esperimenti. Freeman Dyson, contro l’immagine kuhniana di una scienza che avanza per rivoluzioni concettuali, insisteva sulle rivoluzioni prodotte dagli strumenti, e il filosofo John Bickle ha applicato esplicitamente questa lettura alle neuroscienze, proprio a partire dall’optogenetica.
La genealogia è nota: il microscopio, la reazione nera di Camillo Golgi che isolò per la prima volta il singolo neurone nella trama del tessuto, la cristallografia e la criomicroscopia elettronica, il sequenziamento. La storia, come insegna il caso Golgi, mostra comunque che lo strumento allarga ciò che si può osservare e fare, ma non chiude da solo le questioni teoriche.
Quello che l’optogenetica ha aggiunto alla genealogia è la possibilità di intervenire con selettività genetica e precisione temporale. Prima si poteva osservare che una popolazione di neuroni si attivava durante un comportamento. Ora ci si può chiedere se attivarla produce il comportamento e se silenziarla lo abolisce.
Gli esperimenti più spettacolari vengono dal laboratorio di Susumu Tonegawa, che marcando geneticamente i neuroni attivi durante la formazione di un ricordo e rendendoli sensibili alla luce ha potuto riattivare engrammi specifici (tracce fisiche della memoria), impiantare nei topi false associazioni, invertirne la valenza emotiva e mostrare che in alcuni modelli di amnesia la traccia mnestica persiste, pur non essendo più accessibile ai normali meccanismi di richiamo.
Le argomentazioni causali tendono a essere lette dai ricercatori sperimentali in termini di necessità e sufficienza. Ma serve prudenza. La luce impone ai neuroni bersaglio una sincronia e una regolarità di scarica che l’attività spontanea non ha: dimostra che attivare quella popolazione può bastare a evocare un comportamento nelle condizioni dell’esperimento, non che sia così che quella popolazione contribuisce normalmente a produrlo. L’intervento è meno chirurgico di quanto sembri.
Nel 2015 il gruppo di Bence Ölveczky ha mostrato che l’inibizione acuta di un circuito può compromettere un comportamento che invece si ristabilisce dopo la lesione permanente della stessa area: l’effetto immediato può dipendere dalla perturbazione delle reti collegate, mentre col tempo il sistema compensa. Gerald Edelman avrebbe ricondotto il fenomeno alla degeneracy, la proprietà per cui strutture diverse possono svolgere la stessa funzione: anche questa, del resto, è una firma dell’evoluzione, che non costruisce sistemi con un solo percorso possibile. Nulla di ciò riduce il valore della tecnica (sempre Edelman ne ha tracciato una tassonomia). Ogni esperimento risponde alla domanda posta nelle condizioni costruite per porla, e interpretarlo richiede di capire che cosa quelle condizioni aggiungono e che cosa tolgono (copyright Claude Bernard, 1865).
Le applicazioni si estendono ai circuiti del movimento, al Parkinson, all’epilessia, alla dipendenza, e da qualche anno intercettano la clinica. Nel 2006 Zhuo-Hua Pan aveva proposto di rendere fotosensibili, con la canalrodopsina, le cellule retiniche sopravvissute alla perdita dei fotorecettori.
Nel 2021 José-Alain Sahel e colleghi hanno descritto un recupero parziale della funzione visiva in un paziente con retinite pigmentosa, trattato con terapia genica e occhiali che proiettavano sulla retina immagini luminose. È un caso singolo e la funzione rimane lontana dalla norma, ma è una prova di principio che mostra il percorso completo: dalla fototassi di un’alga a una strategia terapeutica da valutare sperimentalmente.
A chi il Nobel?
A quale disciplina appartiene una scoperta del genere? C’è la fisica della luce, la biofisica dei canali, la genetica che fa esprimere la proteina nelle cellule giuste, la neurobiologia che la usa. Il premio di Stoccolma per la medicina ha sempre accolto contributi nati altrove, dalla struttura del DNA nel 1962 alla tomografia computerizzata assegnata nel 1979 a un fisico e a un ingegnere, fino alla risonanza magnetica nel 2003.
Più significativa è la frequenza con cui gli altri due premi scientifici finiscono nel cuore della biologia: il Nobel per la chimica ha premiato la struttura dei canali ionici nel 2003, la GFP nel 2008, la microscopia a super-risoluzione nel 2014, la criomicroscopia elettronica nel 2017, l’evoluzione diretta nel 2018, CRISPR nel 2020, la chimica bioortogonale nel 2022, la progettazione e la previsione delle strutture proteiche nel 2024.
Quello per la fisica ha premiato nel 2018 le pinzette ottiche di Arthur Ashkin, che con la luce afferrano cellule e molecole, e nel 2024 John Hopfield e Geoffrey Hinton per reti artificiali nate da modelli fisici della memoria associativa. Le categorie disciplinari restano utili per organizzare didatticamente l’universo scientifico, ma descrivono sempre meno bene il modo in cui i risultati vengono prodotti.
Lo stesso vale per la regola che limita a tre i premiati. Boyden firmò come primo autore il lavoro del 2005 e ne rivendica la coideazione. Gero Miesenböck aveva ottenuto già nel 2002 il primo controllo ottico geneticamente codificato dei neuroni, con un sistema a più componenti derivato dai fotorecettori di drosophila: ha condiviso con Deisseroth, Hegemann e Nagel diversi premi internazionali.
Bamberg, Pan, Oesterhelt e altri hanno avuto ruoli che nessuna motivazione di tre righe può contenere. L’attacco dei gruppi di ricerca a problemi sempre più complessi ha reso la storia delle scoperte molto più affollata della sua consacrazione. L’elenco dei contributori e la mediatizzazione dei premi scientifici nascondono però soprattutto chi lavora da sempre e di più. In questo caso, il processo di variazione e selezione naturale che, in un’alga che cercava la luce, aveva trovato la soluzione del problema. I biologi lo hanno riscoperto e per risolverlo e manipolarlo hanno dovuto profondere le forme più qualificate dell’ingegno umano.